組織培養とは?
Jesus様は、植物や研究者を含む、すべてを成し遂げました。 ヨハネ1:3はすべてを語る。 came into being through Him
(LSB) 再生は、適切な条件下で、彼が作った能力で働く。
組織培養とは、コントロールされた条件下で生物の細胞、組織、または臓器の成長である。 植物組織の培養では、小さなスタートパーツと呼ばれる エクスパン栄養培地上に配置され、無菌技術を用いて維持されます。この外植体は、シュート先端、芽を帯びた節、葉片、胚、または特定の目的のために選択されたその他の植物部分である可能性があります。
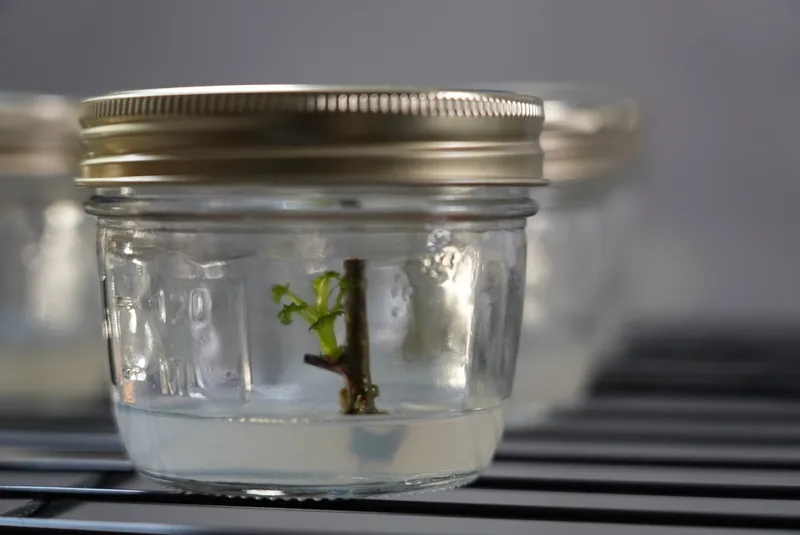
馴染み深いイメージは、透明な培地容器の中の小さな緑の植物です。その背後には、生きた材料の支持、望ましくない微生物の管理、適切な栄養の供給、そして成長が起始組織と環境によってどのように変化するかを理解するという、いくつかの関連するアイデアがあります。無菌増殖は、これらの方法を植物の増殖に応用します。組織培養はより広い分野であり、個々の植物を生産しない実験システムも含まれます。
インビトロ とは、作業が生物体外、一般的には実験室の容器内で行われることを意味します。これは成功の保証ではなく、環境を説明するものです。培養は増殖しなくても生きていることができ、成長しているシュートも確立された植物になる前に過程があります。これらの区別を明確に保つことで、歴史的な発見も日常的な観察も理解しやすくなります。
植物組織培養がどのように機能するか
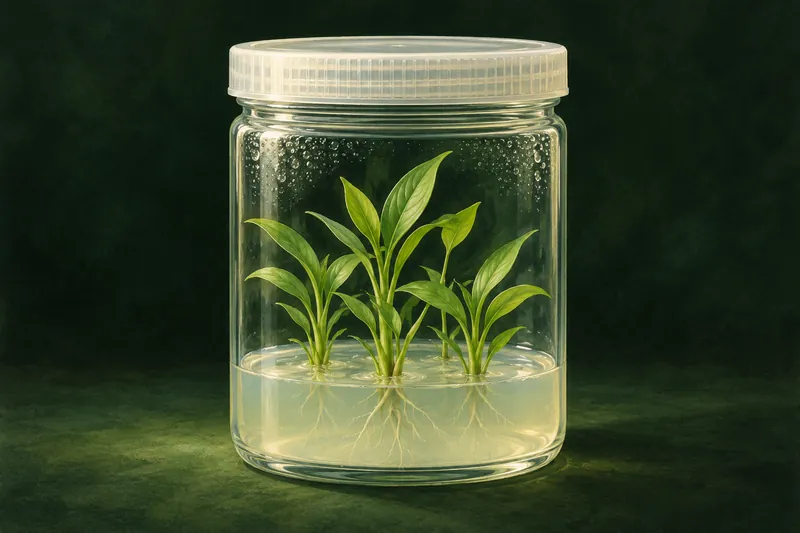
生きている細胞は適切な環境を必要とします。
栄養素は、栽培される材料をサポートします。 システムに応じて、それはミネラル栄養素、ビタミン、炭水化物の源、および植物の成長規制を供給することができます。 それは液体であるか、またはジェリングエージェントによってサポートされる可能性があります。 MurashigeとSkoogの影響力のある培地は、タバコ組織の実験を通じて開発され、ある特定の生物学的問題に対する答えとして有名な表現が始まったことを思い出しました。 [11]
エキサイティングな事柄
「植物組織」は単一の交換可能な材料ではありません。 既存のブードと差別化された葉のセグメントを持つノードは、異なるスタート状況を示しています。 植物のアイデンティティ、栽培、年齢、源条件、および以前の治療は、実験が実際に何をテストしたかを定義するのに役立ちます。 4つのブラックベリー栽培の研究では、研究者たちは特定の治療の範囲内で培養の確立、繁殖、およびアクリマティズムを評価し、その結果はすべてのブラックベリーではなく、その材料や条件に属する。 [20]
トピポテンシーは潜在的であり、自動的な結果ではない。
適切な条件下では、いくつかの植物細胞が植物全体を再生することができます。 科学者たちは、栄養素、ホルモン、細胞分裂を通じてこれを調査しています。 これらの説明は、Jesusが何をしたかを説明し、彼をその創造者として置き換えることはありません。
全力 細胞が適切な状況下で完全な生物を生成する能力を説明する。 植物再生研究は、その可能性を実験的に意味のあるものにした。 それは、あなたが隔離するすべての細胞が再生するか、あるいは、一つのレシピが、いかなるエクスパンツも植物になることを意味するものではありません。 重要な問題は、選ばれた材料が提供された条件下で対応できるかどうかです。 歴史的実験は、答えを信じるよりも、徐々にこれらの条件をテストした。
クリーン、無菌、そしてアセプティックは、異なることを意味します。
掃除は土と廃棄物を除去します。 無菌化および消毒には異なる目的と用途があり、それらを「清掃」に減らすべきものではありません。 実践的な指導のために、使用してください。 アカデミーのクリーンワークレッスン 材料に適した文書化された手順。 この概要はフィールドを説明します;それは種特定のプロトコルの代わりではありません。
組織培養の歴史:共通の成果
研究者たちは、Jesusの創造において働いています。 彼らの実験は信用に値するが、彼らの生活、材料、能力は彼に依存する。 コロシア 1:17 は言う。 in Him all things hold together
(LSB; 読む 1:16–17).
マイクロスコピー、細胞理論、植物栄養、および微生物制御は、後期の組織培養の基礎を置いた。 デザインが先にやってきました。 名前は後に来た。
1665年 ロバート・フーク
ホークはコルク部位を細胞として描いた。 マイクログラフィー. イギリス図書館収集会計.
1838~1839年:マティアス・シュレイデンとテオドール・シュワン
彼らは植物と動物の構造の細胞計算を開発しました。 MBL Rare Books Collection のオリジナル作品.
1860年:ジュリウス・サックスとウィルヘルム・ノップ
土を使わず、養液で植物を育てる方法を発展させました。 Hoagland and Arnon (1950), p. 6.
1860年 ルイ・パステル
パスターの実験は、自発的な生殖と環境からの汚染と結びついた微生物の成長を挑戦しました。 パステル研究所歴史報告書.
1867年:ジョセフ・リスター
Listerは、手術のための彼の抗セプティック原則を発表し、別の分野での汚染をコントロールするための重要な貢献です。 Listerのオリジナル記事.
1800年代後半:ロバート・コック
Kochは、固体培養培地を含む細菌栽培方法を開発し、研究者が微生物を孤立させ、研究するのを助けました。 コッチの培養・方法論(1881年).
フィールド全体を説明する一つの発見はない。 研究者はまず、孤立した物質を生き残らせ、その後、持続可能な成長を示し、その後、発達と再生を理解しなければならなかった。 その進歩の多くは、協力者、慎重な準備、繰り返し転送、そして最初は突破のように見えなかった観察に依存していた。 下のミリステージは、貢献者の完全なリストではなく、選択された例です。
1902年:ゴットリーブ・ハーバーランドが、孤立した植物細胞が何ができるかを尋ねる。
1902年 オーストリアの植物学者 ゴットリーブ・ハーバーランド 出版 Culturversuche mit isolierten プランツェレン孤立した植物細胞との実験を記述する。 彼は、継続的に成長する培養を確立するために必要な細胞分裂を得ることができませんでした。 彼の持続的な貢献は、実験的な質問であった:孤立した植物細胞はサポートされ、最終的に既存の専門状態を超えて発達することができるだろうか。 [1]
Haberlandtはしばしば植物組織培養の父と呼ばれています。 このタイトルは、成功した現代のクローンプロトコルではなく、基本的な提案を認識しています。 この方法で彼の仕事を説明することは、後期の発見を避けられないようにすることなく、またはホルモンの欠けているボトルだけがあらゆる早期の困難を説明することを示唆することなく、彼に信用を与えます。
1922年 - ルイス・クヌドソンがオーキドの拡散を変える。
ルイス・クヌドソン 1922年に、非共生性のラン種子の発芽に関する論文を発表しました。彼は、自然環境で通常必要とされる菌類との関連なしに、調製された培地上でラン種子を発芽させる方法を実証しました。これは、容器内での栄養と実用的な園芸上の機会を結びつけました。 [5]
ここでは重要な区別があります:培養で植えるオルキド種は必ずしも選択されたオルキドをクローンすることはありません。 種子は遺伝的に異なる子孫を生み出すことができます。 次に、植物の拡散の方法は別の目標に向けられました:特定の植物を増殖する。 両方の発展は歴史に属しているが、同じ成果として描かれるべきではない。
1934年~1939年:フィリップ・ホワイト、ロジャー・ガウテレット、ピエール・ノベクルトが成長を維持
1934年、 フィリップR 白い 液体のトマトの根のヒントの潜在的に無制限の成長を達成します。 移植を通じて継続的な成長は、サポートされた培養を短時間にわたって生き残った組織の一部から区別するのに役立ちました。 [2]
1930年代後半、アメリカ合衆国と ロジャー・ジョン・ガウテレット そして、 ピエール・ノベコート フランスでは、持続可能な植物組織培養の重要な例が確立されました。 ホワイトは1939年にカリウスの継続的な成長について出版され、ガウテレットとノベクルトはカロット組織で働いていた。 彼らの貢献は、単一の発明者の名前に圧縮されるよりも、よりよく合計されます。 [3] [4]
実践的な進歩は継続性だった。 培養は繰り返し実験のための材料となり、その後、研究者が栄養、成長規制機関、開発反応を調査することを可能にします。 システムを維持する能力は、より正確な質問をすることを可能にしました。
1949年~1960年:ガヴィーノ・ロトール、ジョージ・モレル、クロード・マーティンが研究を拡散に結びつける。
1949年、 ガヴィーノ・ロトール Jr. 植物性の拡散を表す ファラエノプシス 花の素材を使います。 彼の作品は、オルキドの拡散の記録で認識を得るに値するが、そうでなければ、種子の生成から後期のショットタイプの方法に直接ジャンプする。 オリジナルの説明は、科学史がどれだけ短いタイムラインで隠されているかを示しています。 [6]
1952年、 ジョージ・モレル そして、 クロード・マーティン メリステム培養を使用してウイルス疾患によって影響を受けたダリヤの回復を報告しました。 モレルの後期のオルキドの作業は、ショットタイプの拡散の実用的な重要性を確立するのに役立ちました。 これらの貢献は、開発生物学と庭園生産と植物の健康を結びつけました。 [7] [25]
Meristemの培養は、ジャガイモで育った植物がウイルスフリーであるという文句に翻訳されるべきではありません。 植物の健康要求には、適切なスタート材料、適切な方法、およびテストが必要です。 成果は、特定の問題に対する有用なアプローチの開発であり、それぞれの組織培養の植物に付属する保証ではない。
1955年と1957年:カルロス・ミラー、フォルク・スコーグ、および同僚が成長信号を調査
1955年 キネチン紙 認定 カルロス・O ミラー、フォルク・スコグ、マルコム・H・フォン・ソルツァ、F・ソルツァ Mさん 強い. キネチンは細胞分裂を促進し、重要な初期サイトカイニンとなりました。発見を単一または少数の人物に帰属させるよりも、著者チーム全体に名前を挙げる方が、より正確な全体像を提供します。 [8]
1957年、スコグとミラーは成長と臓器形成の化学規制に関する著作を発表した。 タバコ組織の実験では、アウシンとシトキニンの状態の変化が発達結果を変える可能性があることを示した、ショットと根の形成を含む。 [9]
これは、培地が単なる植物栄養源以上のものであることを説明するのに役立ちました。また、発生シグナルを提供することもできます。しかし、よく知られている「シュートにはより多くのサイトカイニン、根にはより多くのオーキシン」という説明は、導入に過ぎず、普遍的な公式ではありません。材料と実験条件は結果の一部として残ります。
1958年~1959年:カロット培養が胚の形成への道を明らかに
フレデリックC スティーヴァード、マリオンO。 地図とカトリーン・メアーズ 1958年にカロリー栽培における成長と組織開発に関する影響力のある研究を発表した。 彼らの作品は、サマティック胚胎生成の実験的基礎に属する:サマティックから胚の発達ではなく、肥料卵、材料。 [10]
ヤコブ・レイナー 独立してカロリー組織の栽培における胚遺伝子を調査した。 彼の広く引用された1959年の論文は、1958年に部分的に報告された観察に従い、彼は後に最初の人物の記録で説明した記録です。 これらの平行研究線は、共に認識を得るに値する。 [12]
根やショットを作り、サマティック胚を形成する間の区別は重要です。 植物は、さまざまな開発ルートを通じて再生することができます。 緑の植物の写真は、その植物がどのように生産されたかについての全ての物語を語らない。
1962年:Toshio MurashigeとFolke SkoogがMS培地を発表。
トシオ・ムラシゲ そして、 スコットランド 1962年に改訂された培地を公開した。 MS培地は、植物組織培養の広く採用された出発点となりました。 その名前は、両方の研究者の貢献を保存しています。 [11]
今日では、「MS」は、さまざまな準備で販売されるベース式を参照することができます。 生産者は、製品が何を含んでいるか、プロトコルが何を追加または変更しているかを理解する必要があります。 ベース塩、ビタミン、砂糖、成長規制剤、およびジェリング剤は交換できないカテゴリです。 培地を名乗ることは、レシピを文書化する始まりであり、終わりではない。
1964年~1983年:繁殖、プロトプラス、変革が分野を拡大
1964年、 シプラ・グア そして、 チャンドラ・マハシュワリ 胚の生産は、 データ 他の アンターとポーレン培養は、ハフロイド研究と植物栽培に関連するルートを開いた。 彼らの貢献は、なぜ組織培養は成熟した植物のコピーを作るだけで描かれるべきではないことを示しています。 [13]
1971年、 Itaru Takebe、Gudrun Labib、Georg Melchers 孤立したタバコメソフィルプロトプラストから全植物の再生を達成した:壁が取り除かれた細胞。 これは、適切な条件下での再生のもう一つの衝撃的なデモを提供しました。 [14]
1983年には、そのような文書が ロバート・フレイと同僚」 植物細胞における細菌遺伝子の表現に関する研究は、植物遺伝子変換における重要なステップを示した。 組織培養は、生物技術のための実験材料と再生システムを供給し、植物が遺伝子組み換えされたという意味ではなかった。 多くの通常のマイクロプロパガンダプロジェクトには、導入された遺伝子が全く含まれていません。 [15]
動物と人間の組織培養の平行歴史
植物組織培養は、より広いフィールドと共に発展しました。 ロス・グランヴィル・ハリソン 1907年と関連付けられた先駆的な実験は、動物の外で観測可能な胚のの組織から成長する神経繊維を作りました。 Yaleのアーカイブは、この作品を実験的な組織培養の基礎の一つに置いています。 [16]
1951年には、細胞から取り出された ヘンリータ・ラックス 彼女の知識や同意なしに、ヘラの細胞線の源となった。 その貢献は、実験室作業とともに認めなければならない。 ジョージ・ゲイのチームは、生物医学研究で広く使われている培養を確立しました。 NIHのアカウントは、Lacks、彼女の家族、そして細胞が得られた状況を明確に認識しています。 科学的有用性は、同意と尊敬される割り当ての重要性を排除するものではありません。 [17]
ジョン・エンドーズ、トーマス・ウェラー、フレデリック・ロビンズ 1954年のノーベル賞を受賞し、ポリウイルスが異なる組織の培養で成長する可能性があることを示した。 彼らの働きは、ワクチン接種の後の開発を可能にしました。 この医療分野は、生物の外で生き物質をサポートする課題を共有し、その方法や目的はブラックベリーやオルキドを広めることと大きく異なります。 [18]
植物組織培養の旅:エクスパンから確立された植物へ
段階は、植物の成長と発展とともに働き、Jesus様が作ったデザインです。 スタート前に順序を学び、材料を準備し、選択したプロトコルのタイミングと処理に従います。
栽培者にとって、歴史は一連の作業を通じて実用化される。 下の段階では、一般的なマイクロプロパガンダ経路を説明します; 研究室はそれらを別々に分割または名付けすることができます。 胚の栽培、保存、繁殖、細胞生産システムは他のルートに従うことができます。 FAOの拡散ガイドラインは、培養の確立、多様化、根源化、アククリマティズムが実際の収穫システムの中でどのように結びついているかを示しています。 [19]
目的を探索するステージを選択し、何を記録するか、何を問うか。
1位 ソース
ソースを選択して文書化します。 植物を記録し、知られている場合、寄付条件を栽培し、意図的に拡散します。 プロトコルが生産される結果を決定する。
- 目標
- あなたがフォローできるアイデンティティから始めましょう。
- 問うべき質問
- どの植物とどのスタート組織が関与していますか?
- 記録に留まる
- 植物のアイデンティティ、知られている場合の栽培、寄付条件、明確なタイプ。
2. 初代培養
培養を確立する。 準備した材料を適切な条件下に導入します。初期化とは、単に組織を容器に入れることではなく、有用な生きた培養を確立することに関わります。
- 目標
- 役に立つ培養を築く。
- 問うべき質問
- エクスパンが培養に入ってから何が変わったのか。
- 記録に留まる
- 導入日、初期出演、観察、次のチェック。
3. 増殖
材料を増やしたり開発したりする。 選択した増殖経路に従い、各移し替えを記録してください。容器の見かけの満たされ具合だけに頼るのではなく、有用な成長を記録してください。
- 目標
- 各転送を通じて有益な成長を続ける。
- 問うべき質問
- では、次のサイクルで何が続くのでしょうか。
- 記録に留まる
- 親のバッチ、転送日、有用なショット、プロトコルバージョン。
4位 開発
独立成長の準備 根と植物の開発は次の段階に関連して考慮されなければならず、孤立した成功の写真として扱われない。
- 目標
- 次の環境のために植物を準備します。
- 問うべき質問
- 転送前に選択したプロトコルは何を必要としますか?
- 記録に留まる
- 根や開発の観察と準備基準。
5. 順化
気候変動と評価 容器の外の植物を追跡してください。生存とその後の成長を記録し、結果に次の環境への移行を含めてください。
- 目標
- 容器の外の植物を追跡してください。
- 問うべき質問
- 移転後継続は続きますか?
- 記録に留まる
- 移転条件、生存、その後の成長と結果。
役に立つノートブックは、あらゆる段階で同じ質問をすることができます:私は何を始めましたか? 私が提供した条件は? 何が変わった? 次に何をしましたか? その後何が起こったのか。 これらの質問は、農家が強力で失望した結果から学ぶのを助けます。 彼らはまた、レシピ、サプライヤー、栽培、または処理のステップが変化するとき、比較をより意味のあるものにします。
組織培養が可能にするものと、それが保証しないもの
プロパガンダと保存
マイクロプロパガンダは選択された植物材料の増殖をサポートすることができるが、インビトロコレクションとクリオ保存は保存に貢献することができる。 FAOの遺伝銀行基準は、これらを文書化、生存性、セキュリティ、および配布の要件を備えた管理システムとして扱っています。 保存された接続は、そのアイデンティティと状態が追跡可能であるため、単に組織がどこかに保管されているためではなく、価値がある。 [21]
小さな農家にとっては、実践的な規律を示す:両親材料を後期の各バッチに結びつける。 研究コレクションでは、アイデンティティと起源を保存し、保存と回復を通じて材料に結びついていることを意味します。 スケールは物流を変えるが、アイデンティティを失うと、結果の意味が弱まる。
クローン拡散とは、変異が不可能であることを意味するものではありません。
1981年、 ピーター・ラキンとウィリアム・スコクロフト ソマクロン変異に注意を払う:栽培された材料から再生された植物に関連する変異性。 彼らの仕事は、組織培養が多様性の源であり、多様性のためのツールであることが明らかになるのに役立ちました。 したがって、統一性は仮定するよりも評価されるべきである。 [22]
成功したプロトコルには限界がある。
公表された結果は、植物材料、生育条件、測定内容、限界とともに扱う必要があります。「ある実験で成功した」は有用な根拠ですが、「すべての品種で成功する」とは異なります。方法を採用する前に、実際の種、外植片、培養段階、処理、報告された結果を確認してください。自分の条件と異なる場合は、検証が必要な方法として記録します。
あなた自身の培養で何を観察するべきか?
培養は、説明を提供する前に観察を提供する。 有用な記録は、変化がどこに現れたか、いつ始まったか、そして成長が続いたかを説明します。 「カットのブラウンエリア、ショットはまだ成長している」は「悪いジャー」よりも情報的です。
研究について メディニラ・フォーモサナ 切断後、遺伝子表現に関連する変化を検証し、検証した後、文書化されたブラウニング反応。 それは研究に値する生物学的反応としてトップ関連のブラウニングを扱うことをサポートしますが、ブラックベリー培養を診断することはありません。 現地化されたブラウン傷と減少したショットは異なる観察であり、自動的に確認された汚染物質名に変換されるべきではありません。 [23]
可能な場合は、密閉された容器を通して写真を撮り、観察日にちを記し、後の発生と比較する。以下の4つのノートを分けて保管する: 観察、解釈、行動、結果」 解釈が変われば、以前の観察を保存してください。 それは、ストーリーを書き直す代わりに学習記録を作成し、終わりに合う。
MyTCLab 接続 準備、バッチ、場所、および雑誌記録 こうした細部が一緒に残ることができる。 ソフトウェアは、サポートされていない説明を有効なプロトコルに変換することはできません。 その目的は、作業を組織しやすくし、証拠を再検討することを容易にすることです。
組織培養に関するよくある質問
組織培養はマイクロプロパガンダと同じですか?
マイクロプロパガンダは、植物の増殖を目的とした植物組織培養のアプリケーションです。 より広い分野には、細胞の栽培、臓器の栽培、実験的な再生、生殖方法、保存システムも含まれています。
遺伝子組み換えの植物は遺伝子組み換えですか?
広がる方法だけでは、それを確立するものではありません。 通常のクローン増殖と遺伝子変換は異なる活動であるが、変換研究は組織培養と再生技術を使用することができる。
無菌の容器で育成することが、病原菌のない植物を保証しますか?
いいえ。培地の外観と植物の試験された健康状態は異なる種類の証拠です。特定の病原体からの自由に関する主張には、適切な生産および試験プロセスが必要です。
初心者は植物組織培養を学ぶことができますか?
はい。ワークフロー、測定、清潔な取り扱い、そして各段階の目的を理解することから始めましょう。文書化された開始方法を選択し、範囲を管理可能なものに保ち、すべての容器が成功することを期待するのではなく、記録を通じて進捗を判断してください。
知識をアクセスできるようにする
人々は心から反応し、ソーシャルメディアで美しい太陽の花の写真が好きです。 Jesus様は、太陽の花、写真家、そして彼らの周りの世界を作りました。 私たちの生活、呼吸、意志、そして創造する能力は、彼の持続的なケアに依存しています。 意識するということは、シーン全体で彼を認識し、彼に感謝することを意味します。
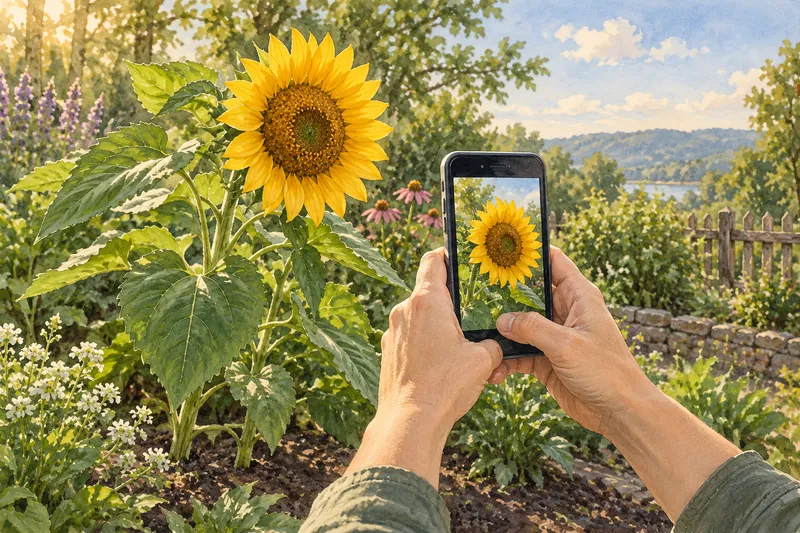
フィールドは今日の農家に地図書よりも多くのものを通じて到達しました。 技術者、教員研究所、商業プロパガーター、植物学コレクション、および患者教育者は、技術を繰り返し理解できるようにしました。 公正なアカウントは、この選択された歴史を仮定せずに貢献することを認識し、クレジットに値するすべての人を名付けます。
現代の教育者はまた、人々が第一歩を踏み出すのを助けます。 ローラの 春の植物 アクセス可能なチュートリアル、サプライズ、実践的なデモを通じて組織培養を説明します。 ロー自身の導入は、趣味者として始まり、見つけることが困難なシンプルな説明を作り出すことを説明します。 [24]
MyTCLabの創設者、スティーヴァード・クリントンにとって、ローの教えはこのプロセスを解体し、好奇心から実践学習への移行にインスピレーションを与えた。 それは影響力の個人的な認識であり、ローが組織培養を発明したか、MyTCLabを支持しているという主張ではありません。 他の人が可能なことを理解するのを助けることは、その分野での参加に有意義な貢献です。
この概要がテーマをより明確にした場合、その内容を継続してください。 フリー テーブル培養アカデミー」 それは植物の文脈、清潔な作業流、培地、測定、培養段階、問題解決、および証拠をカバーします。 次の役に立つステップは、すべての日付を記憶することではありません。 それは、あなたの仕事の次の部分を十分に理解して、それを慎重に実行し、結果を観察し、それから学びます。
遺産標準聖書(Legacy Standard Bible, LSB)
聖書は創造主を名付け、研究文書は観察をしています。 短いLSBは、完全なパスポートへのリンクを排出します。
- ヨハネ 1:3 (LSB)
- コロシア 1:16-17 (LSB)
- ヘブライ語 1:2 (LSB):
He made the worlds
. - 創世記1:11~12(LSB):
plants yielding seed
. - ローマ 1:20 (LSB):
being understood through what has been made
.
参考とオリジナル出版物
- Haberlandt, G. (1902). Culturversuche mit isolierten Pflanzenzellen. Original publication, Biodiversity Heritage Library. Read source 1
- White, P. R. (1934). Potentially Unlimited Growth of Excised Tomato Root Tips in a Liquid Medium. Plant Physiology 9:585–600. Read source 2
- White, P. R. (1939). Potentially Unlimited Growth of Excised Plant Callus in an Artificial Nutrient. American Journal of Botany. Read source 3
- Nobécourt, P. (1942). Sur la culture illimitée des tissus végétaux. First-person account discussing the early carrot cultures and Gautheret’s parallel work. Read source 4
- Knudson, L. (1922). Nonsymbiotic Germination of Orchid Seeds. Botanical Gazette 73:1–25. Read source 5
- Rotor, G. Jr. Vegetative Propagation of Phalaenopsis. Original article scan hosted by North Carolina State University; related 1949 account in the American Orchid Society archive. Read source 6
- Morel, G., and Martin, C. (1952). Guérison de dahlias atteints d’une maladie à virus. Comptes rendus de l’Académie des sciences 235:1324–1325. Read source 7
- Miller, C. O., Skoog, F., von Saltza, M. H., and Strong, F. M. (1955). Kinetin, a Cell Division Factor from Deoxyribonucleic Acid. JACS 77:1392. Read source 8
- Skoog, F., and Miller, C. O. (1957). Chemical regulation of growth and organ formation in plant tissues cultured in vitro. Symposia of the Society for Experimental Biology 11:118–130. Read source 9
- Steward, F. C., Mapes, M. O., and Mears, K. (1958). Growth and Organized Development of Cultured Cells. II. Organization in Cultures Grown from Freely Suspended Cells. American Journal of Botany 45:705–708. Read source 10
- Murashige, T., and Skoog, F. (1962). A Revised Medium for Rapid Growth and Bio Assays with Tobacco Tissue Cultures. Physiologia Plantarum 15:473–497. Read source 11
- Reinert, J. (1984). First-person commentary on his 1959 carrot embryogenesis paper and observations reported in 1958. Citation Classics, University of Pennsylvania archive. Read source 12
- Guha, S., and Maheshwari, S. C. (1964). In vitro Production of Embryos from Anthers of Datura. Nature 204:497. Read source 13
- Takebe, I., Labib, G., and Melchers, G. (1971). Regeneration of whole plants from isolated mesophyll protoplasts of tobacco. Naturwissenschaften 58:318–320. Read source 14
- Fraley, R. T., and colleagues (1983). Expression of bacterial genes in plant cells. PNAS 80:4803–4807. Read source 15
- Yale School of Medicine. History of the Department of Cell Biology (2011), including Harrison’s early tissue-culture experiments. Read source 16
- National Institutes of Health (2013). Guidance on acknowledgement and use of HeLa cell whole-genome sequence data, recognizing Henrietta Lacks and her family. Read source 17
- Enders, J. F., Robbins, F. C., and Weller, T. H. (1954). The Cultivation of the Poliomyelitis Viruses in Tissue Culture. Nobel Lecture. Read source 18
- Zaid, A., and de Wet, P. F. Date Palm Propagation. FAO, chapter V. Crop-specific guidance, not a universal protocol. Read source 19
- Enhancing In Vitro Multiplication and Acclimatization of Blackberry (Rubus L.) Through Sterilization Optimizing and Growth Regulator Use (2025). Horticulturae 11:1422. Four cultivars studied; not Ouachita validation. Read source 20
- FAO. Genebank Standards for Plant Genetic Resources for Food and Agriculture: in vitro culture and cryopreservation. Read source 21
- Larkin, P. J., and Scowcroft, W. R. (1981). Somaclonal variation—a novel source of variability from cell cultures for plant improvement. Theoretical and Applied Genetics 60:197–214. Read source 22
- Characterization and Comparative Expression Profiling of Browning Response in Medinilla formosana after Cutting (2016). Original research; species-specific evidence. Read source 23
- Laur, Plants in Jars. About Plants in Jars and beginner tutorial information. First-person account; checked October 17, 2026. Read source 24
- Morel, G. (1960). Producing Virus-Free Cymbidiums. American Orchid Society Bulletin 29:495–497; original July 1960 issue archive. Read source 25