什么是组织培养?
Jesus做了一切,包括植物和研究者。 约翰1:3 说一切 came into being through Him
(LSB) ) 重生在他所创造的能力下工作,在适当的条件下。
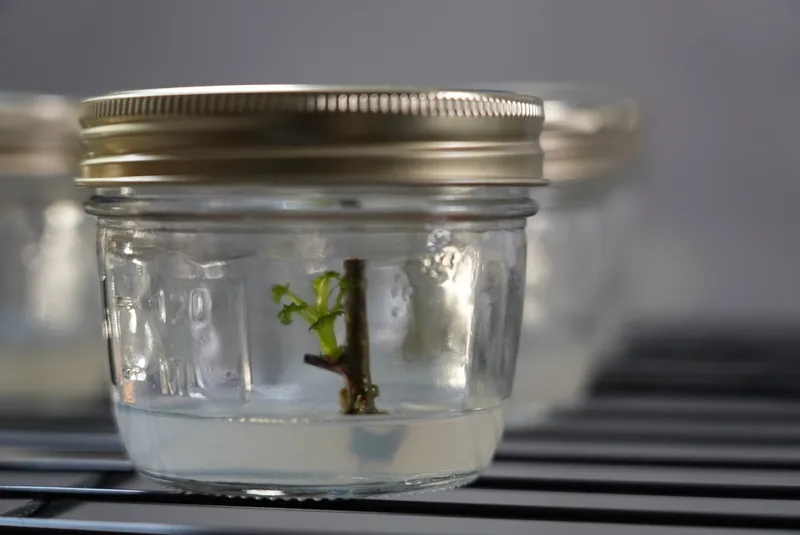
组织培养是组织外的活细胞、组织或器官在控制条件下生长。 在植物组织培养中,一个小起点,称为一个 爆发放置在或置于营养培养基中,并使用无菌技术维持。该外植体可能是一个芽尖、一个带有芽的节、一个叶片片段、一个胚胎或其他为特定目的选择的植物部分。
人们熟悉的图像是在透明培养容器内的小绿色植株。它背后是几个相互关联的想法:支持活体材料、管理不需要的微生物、提供合适的营养,以及了解生长如何随起始组织和环境而变化。微繁殖将这些方法应用于植物的增殖。组织培养是更广泛的领域;它还包括不产生完整植株的实验系统。
在VITRO 意味着工作发生在生物体外部,通常在实验室容器中。它描述的是环境,而不是成功的保证。培养物在不繁殖的情况下也可以存活,而正在生长的芽仍然在成为成熟植株之前还有一段过程。保持这些区别清晰,可以使历史发现和日常观察都更容易理解。
植物组织培养如何工作
活细胞需要适当的环境
营养的媒介支持正在种植的材料。 根据系统,它可以供应矿物质营养物质,维生素,碳水化合物来源,和植物生长调节剂。 它可以液体或由粘合剂支持。 穆拉希格和斯科格的影响力培养基是通过烟草组织的实验开发的,这提醒了一个著名的公式开始作为一个特定的生物问题的回应。 [11]
突出事项
“植物组织”不是一个可交换的材料。 一个具有现有布和分离的叶片部分的节点存在不同的开始情况。 植物的身份、种植、年龄、源条件和以前的治疗有助于确定实验实际上测试了什么。 在四种黑豆种植的研究中,研究人员在特定治疗中评估了培养的建立、繁殖和调节;其结果属于这些材料和条件,而不是每个黑豆。 [20]
全能是潜力,而不是自动的结果
在适当的条件下,一些植物细胞可以恢复整个植物。 科学家通过营养素、荷尔蒙和细胞分裂来研究这一点。 這些解釋描述了Jesus所作的;他們不取代他作為他的造物主。
全能 描述一个细胞在适当的情况下产生完整的生物的能力。 植物再生研究使这种潜在的实验意义。 这并不意味着你隔离的每一个细胞都会再生,或者一个食谱会使任何爆发物变成植物。 重要问题是,是否选择的材料可以在所提供的条件下回应。 历史实验逐渐测试了这些条件,而不是假设答案。
清洁、无菌、无菌操作的意思是不同的。
清洁清除土壤和废物。 无菌化和消毒有不同的用途和应用;也不应该减少到“清洁更多”。无菌操作技术关心如何处理准备材料,以避免引入不需要的生物。 实用指示,使用 学院的清洁工作课程 并对材料进行适当的文档程序。 此概述解释了该领域;它不是物种特定的协议的替代品。
组织培养的历史:共享成就
研究人员在Jesus的创造中工作。 他们的实验值得信赖;他们的生活、材料和能力依赖于他。 哥洛西亚 1:17 說 in Him all things hold together
(LSB; 阅读 1:16–17).
微观,细胞理论,植物营养和微生物控制为后期组织培养奠定了基础。 设计先来了。 名字后来来了。
1665年:罗伯特·胡克
胡克描述了科克分区作为细胞 微观. 英国图书馆收藏账户.
1838年至1839年:Matthias Schleiden和Theodor Schwann
他们开发了植物和动物结构的细胞计算。 MBL Rare Books Collection 的原创作品.
1860年:朱利乌斯·萨克斯和威尔赫姆·诺普
他们在没有土壤的营养解决方案中促进了植物生长。 Hoagland and Arnon(1950年),第6页.
1860年:路易·帕斯特
帕斯特尔的实验挑战了自发生育和与环境污染相关的微生物生长。 帕斯特尔研究所历史记录.
1867年:Joseph Lister
Lister 发表了他的抗生素手术原则,这是控制污染在另一个领域的重要贡献。 Lister的原创作品.
1800年代末:罗伯特·科赫
科赫开发了细菌种植方法,包括坚固的培养培养基,帮助研究人员隔离和研究微生物。 科赫的培养方法论文(1881年),RKI档案.
没有一个发现可以解释整个领域。 研究人员首先不得不保持隔离材料的生存,然后表现出持续的增长,然后理解发展和复兴。 这一进展的大部分依赖于合作伙伴,谨慎的准备,重复的转会和观察,起初看起来不像突破。 下面的步骤是选择的例子,而不是贡献者的完整列表。
1902年:Gottlieb Haberlandt问孤立植物细胞能做些什么
1902年,奥地利植物学家 格特利布·哈伯兰特 发表 Culturversuche mit isolierten 佛罗伦萨,描述与隔离植物细胞的实验。 他没有获得需要建立不断增长的培养的细胞分裂。 他的持久贡献是实验问题:可以孤立的植物细胞得到支持,并最终超越其现有专门状态发展吗? [1]
Haberlandt经常被称为植物组织培养的父亲。 这个标题承认了一个基本的建议,而不是一个成功的现代克隆协议。 这样描述他的工作给了他信用,而不让后来的发现看起来不可避免,或者暗示一个缺乏荷尔蒙的瓶子单独解释了每一个早期的困难。
1922年:路易斯·克努德森改变了乐队的传播
路易斯·库德森 发表于1922年关于非共生兰花种子萌发的研究。他展示了一种在准备好的培养基上萌发兰花种子的方法,而无需其自然环境中通常需要的真菌共生。这将培养容器中的营养与实际的园艺机会联系起来。 [5]
这里有一个重要区别:在培养条件下培育兰花幼苗,并不一定是在克隆某株选定的兰花。种子产生的后代可能具有不同的遗传组成。后来发展的营养繁殖方法则着眼于另一个目标:繁殖某一特定植株。这两项发展都属于组织培养的历史,但不应被描述为同一项成就。
1934年至1939年:菲利普·怀特、罗杰·加特和皮埃尔·诺贝库尔保持增长
1934年, 菲利普R 白色 在液体中可能无限的粉碎的番茄根提示的增长。 通过转移的持续增长有助于区分一个受支持的培养,而不是一个组织的碎片,它只生存了很短的时间。 [2]
到1930年代末,白人在美国和 饰 Roger-Jean Gautheret 和 皮埃尔·诺贝科尔 在法国建立了可持续的植物组织培养的重要例子。 白色出版于1939年继续加洛斯生长;Gautheret和Nobecourt与玉米组织工作。 他們的貢獻比在一個發明者的名字中被壓縮更好。 [3] [4]
实际的进步是连续性。 培养可以成为重复实验的材料,使后来的研究人员能够研究营养,生长调节剂和发展反应。 保持系统的能力使更准确的问题成为可能。
1949年至1960年:Gavino Rotor、Georges Morel和Claude Martin将研究连接到传播
1949年, 加维诺·罗托尔 Jr. 描述的植物传播 Phalaenopsis 的评论 使用花梗材料。他的工作在关于兰花繁殖的记载中值得认可,这些记载否则会直接从种子萌发跳跃到后期的芽尖方法。最初的描述展示了过度简短的时间线可以隐藏多少科学历史。 [6]
1952年, 乔治·莫雷 和 克劳德·马丁 报告了使用分生组织培养恢复受病毒病影响的万寿菊。莫雷尔后来与兰花合作的工作有助于确立芽尖繁殖的实际重要性。这些贡献将发育生物学与园艺生产和植物健康联系起来。 [7] [25]
Meristem 培养不应该被翻译成一个表格的承诺,任何植物种植在一个草坪是无病毒的。 植物健康要求需要适当的起始材料、相关方法和测试。 成就是开发对特定问题有用的方法,而不是对每个组织种植的植物的保证。
1955年和1957年:卡洛斯·米勒、福尔克·斯科格和同事研究增长信号
1955年《金属纸》 卡洛斯·奥 米勒、福克斯科格、马尔科姆·H·冯·索尔茨和F·索尔茨 M。 强大是 Kinetin促进了细胞分裂,成为一个重要的早期细胞素。 命名整个作家团队给了一个更准确的图像,而不是将其发现归咎于只有一个或两个人。 [8]
1957年,Skoog和Miller发表了他们关于生长和器官形成化学调控的里程碑式工作。烟草组织实验表明,改变生长素和细胞分裂素的条件可以改变发育结果,包括芽和根的形成。 [9]
这有助于解释为什么培养基不仅仅是植物的食物。它还可以提供发育信号。然而,人们熟悉的“茎尖需要更多细胞分裂素,根尖需要更多生长素”的解释只是一个入门知识,而不是一个普遍的公式。材料和实验条件仍然是结果的一部分。
1958年至1959年:玉米培养揭示胚胎形成的路径
弗雷德里克C 史蒂弗,玛丽安·奥。 地图,和Katryn Mears 出版了1958年大豆种植的影响力增长和组织发展研究。 他们的工作属于索马里胚胎的实验基础:胚胎从索马里,而不是肥卵,材料的发育。 [10]
雅各布·雷纳特 在玉米组织种植中独立研究胚胎生殖。 他的广泛引用的1959年论文跟随了部分在1958年报告的观察,他后来在一份第一人报告中解释了一段时间。 这些平行研究线值得共同认可。 [12]
区分是诱导根芽还是诱导体细胞胚胎的形成很重要。植物可以通过不同的发育途径进行再生。一张绿色植株的照片并不能说明该植株是如何产生的全部过程。
1962年:Toshio Murashige和Folke Skoog发布MS培养基
托西奥·穆拉希格 和 民间斯科格 1962年发表了其修订的培养基。 MS中间已成为植物组织培养的广泛采用的起点。 它的名字保留了两位研究人员的贡献。 [11]
今天,“MS”可以指出售在不同的制作中的一种基本的配方。 一个农民仍然需要了解一个产品包含什么,以及一个协议添加或改变什么。 基盐、维生素、糖、生长调节剂和润滑剂是不可交换的类别。 命名媒介是文档的开始,而不是结局。
1964年至1983年:种植、原植和转型扩大了该领域
1964年, 西布拉·古哈 和 饰 Chandra Maheshwari 胚胎产量从 日期 其他人。 其他和粉末培养开辟了对哈普洛伊德研究和植物种植相关的路线。 他们的贡献表明为什么组织培养不应该仅仅描述成成熟植物的副本。 [13]
1971年, Itaru Takebe, Gudrun Labib, 和 Georg Melchers 全植物再生从隔离的烟草梅索菲尔原体:细胞,其墙壁已被移除。 这使得在适当的条件下再生的另一个令人震惊的表现。 [14]
直到1983年,如 罗伯特·弗莱和同事们” 在植物细胞中的细菌基因表达工作证明了植物基因转型的重要步骤。 组织培养为生物技术提供了实验材料和再生系统;这本身并不意味着植物是基因工程的。 许多常见的微传项目根本没有引入基因。 [15]
动物和人类组织培养的平行历史
植物组织培养与一个更广泛的领域一起发展。 罗斯·格兰维尔·哈里森 在 1907 年前后开展的开创性实验,使人们能够在动物体外观察蛙胚组织的神经纤维生长。耶鲁大学的档案记述将这项工作列为实验组织培养的基础之一。 [16]
1951年,由 亨利塔·拉克斯 沒有她的知識或同意,成為HeLa細胞線的源泉。 它的贡献必须与实验室工作一起得到认可。 乔治·盖的团队建立了在生物医学研究中广泛使用的培养。 NIH的账户明确地认识到Lacks,她的家人,以及细胞获得的情况。 科学有用性不会消除同意和尊重的奉献的重要性。 [17]
约翰·爱德斯、托马斯·威勒和弗雷德里克·罗宾斯 因证明脊髓灰质炎病毒能够在不同组织的培养物中生长而获得 1954 年诺贝尔奖。他们的工作为后续疫苗研发创造了条件。这一医学分支同样需要在生物体外维持活材料,但其方法和目的与繁殖黑莓或兰花有很大不同。 [18]
植物组织培养之旅:从爆发到建立的植物
这些阶段与植物的成长和发展相结合,这是Jesus所设计的。 在开始之前学习序列:准备材料,并遵循所选择的协议的时间和处理。
对于农民来说,历史通过一系列工作成为实用。 下面的步骤描述了一个常见的微传播路径;实验室可以分开或命名它们不同。 胚胎培养、保存、繁殖和细胞生产系统可以跟随其他路径。 粮农组织的传播指南描述了培养建立、繁殖、根植和生态化如何在一个真正的种植体系中相连。 [19]
选择一个阶段来探索它的目的,要问的问题,并记录什么。
1。 来源
选择并记录源。 记录植物,如果已知,种植,捐赠条件,并意图爆发。 决定什么结果,该协议旨在生产。
- 目标
- 开始一个你可以跟踪的身份。
- 一个问题要问
- 哪种植物和哪种开始组织参与?
- 保持在记录中
- 植物身份,如果已知,种植,捐赠条件,爆发类型。
2. 初代培养
建立培养。 将预制材料引入适宜的条件下。接种关注建立有用的活体培养物,而不仅仅是将组织放入培养容器中。
- 目标
- 建立有用的生活培养。
- 一个问题要问
- 爆发进入培养后发生了什么变化?
- 保持在记录中
- 输入日期、初始出现、观察和下一次检查。
3. 增殖
多元化或开发材料。 遵循选择的繁殖路线并记录每次转移。记录有用的生长情况,而不是仅凭培养容器看起来有多满。
- 目标
- 通过每个转会,跟随有用的增长。
- 一个问题要问
- 那么,到底能在下一个周期内继续做些什么呢?
- 保持在记录中
- 母批次,转移日期,可用芽和方案版本。
4、 發展
为独立增长做好准备。 根和草坪的开发必须考虑到下一个阶段,而不是作为成功的孤立照片。
- 目标
- 为其下一个环境做好准备。
- 一个问题要问
- 转会前所选择的协议需要什么?
- 保持在记录中
- 根或发展观察和准备标准。
5. 驯化
调节和评估。 让植物离开培养容器。记录存活情况和后续生长,以便结果包括过渡到其下一个环境。
- 目标
- 让植物离开其培养容器。
- 一个问题要问
- 转会后会继续安装吗?
- 保持在记录中
- 转移条件、生存、随后的增长和结果。
一个有用的笔记本可以在每个阶段提出相同的问题:我从什么开始? 我提供的条件是什么? 什么变了? 接下来我做了什么? 之后发生了什么? 这些问题有助于农民从强烈和令人失望的结果中学习。 它们也使比较更有意义,当一个食谱,供应商,种植,或处理步骤的变化。
什么组织培养使可能 - 它不保证什么
宣传与保存
微流可以支持选择的植物材料的复制,而 in vitro 收藏和 cryopreservation 可以为保存做出贡献。 联合国粮农组织基因银行标准将这些系统视为具有文档、可行性、安全性和分销要求的管理系统。 保留的附属品是有价值的,因为它的身份和状态仍然可追踪,而不仅仅是因为组织存储在某个地方。 [21]
对于一个小农民来说,这是一个实用的纪律:将父母材料连接到每个后续包。 对于研究收藏,这意味着通过存储和恢复,将身份和起源与材料相关联。 规模改变物流,但失去身份削弱结果的意义。
克隆传播并不意味着变异是不可能的
1981年, 彼得·拉金和威廉·斯科克罗夫特 注意到索马克隆变异:与从种植材料中再生植物相关的变异性。 他们的工作有助于澄清,组织培养可以是多样性的来源,也是多样化的工具。 因此,统一性应该被评估而不是假设。 [22]
成功的协议有界限
一个公布的结果应该与其植物材料、生长条件、测量和限制一起旅行。 “它在一个实验中工作”是有用的证据,但它不是同样的说法“它将在每个种植者工作”。在采用一种方法之前,寻找真正的物种,探测,阶段,治疗,特别是结果。 如果这些细节不符合您的情况,标记该方法为值得评估的东西。
你在自己的培养中应该注意什么?
培养提供观察,而不是解释。有用的记录描述了变化出现的位置、开始的时间以及生长是否持续。“切口处的棕色区域,新梢仍在生长”比“培养瓶不好”更有信息量。它留下了调查原因的空间,而无需重写实际看到的内容。
研究在 梅迪尼拉 Formosana 记录了切割后褐变反应,并检查了基因表达的伴随变化。这支持将与切割相关的褐变视为值得研究的生物学反应,但它不能诊断黑莓的培养情况。局部的棕色伤口和衰退的芽是不同的观察结果,两者都不应自动转换为确定的污染物名称。 [23]
尽可能使用封闭的培养容器拍摄照片,注明观察日期,并将其与后续发育进行比较。请保留四份独立的记录: 观察、解释、行动和结果是 如果你的解释改变,保持以前的观察。 这创造了一个学习记录,而不是一个重写的故事,以适应结局。
MyTCLab 连接 准备,集合,地点和日志记录 因此,这些细节可以保持在一起。 该软件无法将未支持的解释转化为验证的协议。 其目的是使工作更容易组织,证据更容易重新审查。
关于组织培养的常见问题
组织培养与微传播相同吗?
Micropropagation 是一种植物组织培养的应用,旨在繁殖植物。 更广泛的领域还包括细胞培养、器官培养、实验性再生、养殖方法和保存系统。
种植的植物是基因改造的吗?
只有传播方法并没有证明这一点。 正常的克隆多元化和基因转化是不同的活动,尽管转化研究可以使用组织培养和再生技术。
在无菌培养容器中生长是否能保证无病原体的植株?
不。培养容器的外观和植物的检测健康状况是不同类型的证据。关于免受特定病原体侵害的声明需要适当的生产和检测过程。
初学者可以学习植物组织培养吗?
是的。首先要了解工作流程、测量、清洁处理和每个阶段的目的。选择一个有记录的起始方法,保持范围可控,并通过记录来判断进展,而不是期望每个培养容器都能成功。
让知识更容易获取
人們用心來回應,喜歡在社交媒體上拍一張美麗的陽花照片。 Jesus创造了太阳花、摄影师和周围的世界。 我們的生活、呼吸、意志和創造的能力,取決於他持久的照顧。 意识到,就是在整个场景中认识他,并感谢他。
该领域通过超过地图纸来达到今天的农民。 技术人员、教学实验室、商业宣传员、植物学收藏品和患者教育人员使技术可重复、可理解。 一个公平的账户承认,没有假设这个选择的历史的贡献,谁都值得信用。
现代教育者也帮助人们迈出第一步。 劳尔的 春天的植物 通过可用的教程、供应和实用示范来解释组织培养。 劳尔的介绍描述了开始作为一个爱好者,并创造了很难找到的简单解释。 [24]
对于MyTCLab的创始人Steward Clinton来说,劳尔的教学有助于解析这个过程,并激励了从好奇心转向实践学习的转变。 这是影响的个人认可,而不是说劳尔发明了组织培养或支持MyTCLab。 帮助另一个人了解什么是可能的,是参与该领域的有意义的贡献。
如果此概述使主题更清晰,请继续 免费Tissue培养学院是 它涵盖植物背景、清洁工作流、培养基、测量、培养阶段、麻烦解决和证据。 下一个有用的步骤不是记住每个日期。 理解你的下一部分工作足以仔细完成,观察结果,并从中学习。
经文: 遗传标准圣经(LSB)
經文名稱創造者;研究文件觀察。 简短的 LSB 输出链接到完整的通道。
- 约翰 1:3 (LSB)
- 哥洛西亚人 1:16-17 (LSB)
- 希伯来文1:2(LSB):
He made the worlds
. - 福音1:11至12(LSB):
plants yielding seed
. - 罗马书1:20(LSB):
being understood through what has been made
.
参考和原创出版物
- Haberlandt, G. (1902). Culturversuche mit isolierten Pflanzenzellen. Original publication, Biodiversity Heritage Library. Read source 1
- White, P. R. (1934). Potentially Unlimited Growth of Excised Tomato Root Tips in a Liquid Medium. Plant Physiology 9:585–600. Read source 2
- White, P. R. (1939). Potentially Unlimited Growth of Excised Plant Callus in an Artificial Nutrient. American Journal of Botany. Read source 3
- Nobécourt, P. (1942). Sur la culture illimitée des tissus végétaux. First-person account discussing the early carrot cultures and Gautheret’s parallel work. Read source 4
- Knudson, L. (1922). Nonsymbiotic Germination of Orchid Seeds. Botanical Gazette 73:1–25. Read source 5
- Rotor, G. Jr. Vegetative Propagation of Phalaenopsis. Original article scan hosted by North Carolina State University; related 1949 account in the American Orchid Society archive. Read source 6
- Morel, G., and Martin, C. (1952). Guérison de dahlias atteints d’une maladie à virus. Comptes rendus de l’Académie des sciences 235:1324–1325. Read source 7
- Miller, C. O., Skoog, F., von Saltza, M. H., and Strong, F. M. (1955). Kinetin, a Cell Division Factor from Deoxyribonucleic Acid. JACS 77:1392. Read source 8
- Skoog, F., and Miller, C. O. (1957). Chemical regulation of growth and organ formation in plant tissues cultured in vitro. Symposia of the Society for Experimental Biology 11:118–130. Read source 9
- Steward, F. C., Mapes, M. O., and Mears, K. (1958). Growth and Organized Development of Cultured Cells. II. Organization in Cultures Grown from Freely Suspended Cells. American Journal of Botany 45:705–708. Read source 10
- Murashige, T., and Skoog, F. (1962). A Revised Medium for Rapid Growth and Bio Assays with Tobacco Tissue Cultures. Physiologia Plantarum 15:473–497. Read source 11
- Reinert, J. (1984). First-person commentary on his 1959 carrot embryogenesis paper and observations reported in 1958. Citation Classics, University of Pennsylvania archive. Read source 12
- Guha, S., and Maheshwari, S. C. (1964). In vitro Production of Embryos from Anthers of Datura. Nature 204:497. Read source 13
- Takebe, I., Labib, G., and Melchers, G. (1971). Regeneration of whole plants from isolated mesophyll protoplasts of tobacco. Naturwissenschaften 58:318–320. Read source 14
- Fraley, R. T., and colleagues (1983). Expression of bacterial genes in plant cells. PNAS 80:4803–4807. Read source 15
- Yale School of Medicine. History of the Department of Cell Biology (2011), including Harrison’s early tissue-culture experiments. Read source 16
- National Institutes of Health (2013). Guidance on acknowledgement and use of HeLa cell whole-genome sequence data, recognizing Henrietta Lacks and her family. Read source 17
- Enders, J. F., Robbins, F. C., and Weller, T. H. (1954). The Cultivation of the Poliomyelitis Viruses in Tissue Culture. Nobel Lecture. Read source 18
- Zaid, A., and de Wet, P. F. Date Palm Propagation. FAO, chapter V. Crop-specific guidance, not a universal protocol. Read source 19
- Enhancing In Vitro Multiplication and Acclimatization of Blackberry (Rubus L.) Through Sterilization Optimizing and Growth Regulator Use (2025). Horticulturae 11:1422. Four cultivars studied; not Ouachita validation. Read source 20
- FAO. Genebank Standards for Plant Genetic Resources for Food and Agriculture: in vitro culture and cryopreservation. Read source 21
- Larkin, P. J., and Scowcroft, W. R. (1981). Somaclonal variation—a novel source of variability from cell cultures for plant improvement. Theoretical and Applied Genetics 60:197–214. Read source 22
- Characterization and Comparative Expression Profiling of Browning Response in Medinilla formosana after Cutting (2016). Original research; species-specific evidence. Read source 23
- Laur, Plants in Jars. About Plants in Jars and beginner tutorial information. First-person account; checked October 17, 2026. Read source 24
- Morel, G. (1960). Producing Virus-Free Cymbidiums. American Orchid Society Bulletin 29:495–497; original July 1960 issue archive. Read source 25